
La lluvia revela una vulnerabilidad que la cereza ha adquirido durante su desarrollo. Para comprender el rajado hay que seguir cómo crece el fruto, cómo se transforma su piel y qué sucede cuando el agua alcanza una zona debilitada. El conocimiento actual sitúa el inicio del daño a escala local y relaciona su propagación con la pérdida de cohesión de los tejidos. Esta perspectiva permite interpretar por qué frutos aparentemente semejantes responden de manera diferente a una misma exposición al agua.
Crecimiento y cutícula
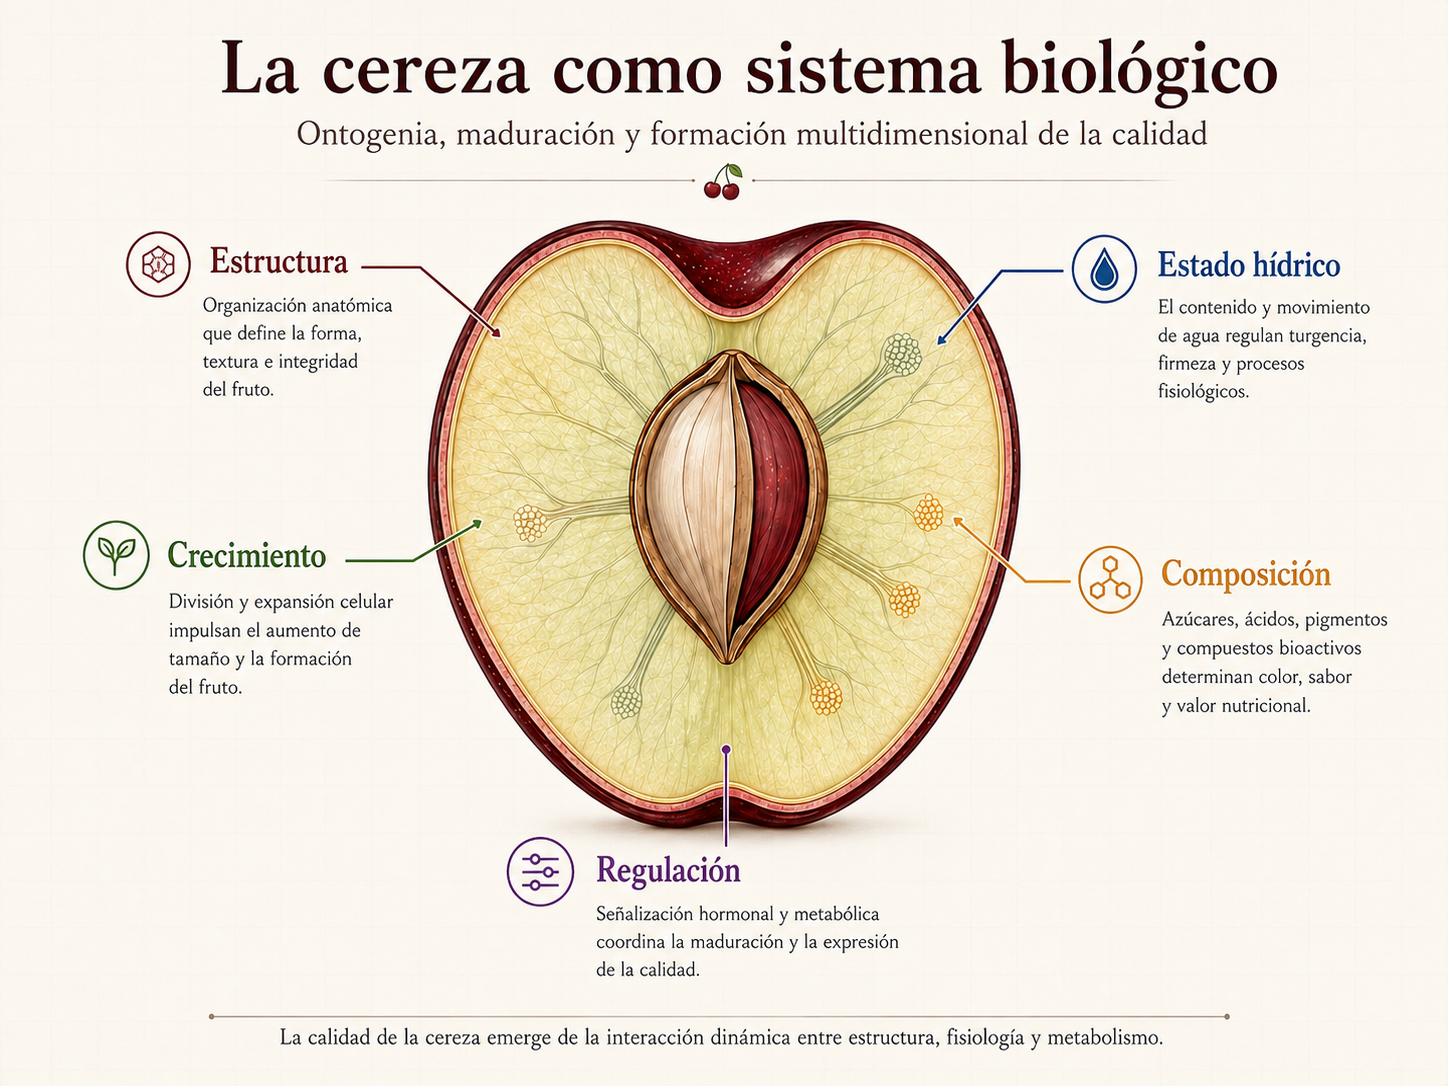
La cereza debe ampliar su superficie mientras aumenta el volumen de la pulpa. Su crecimiento sigue una curva doble sigmoide: tras una primera fase de crecimiento activo, el endurecimiento del hueso coincide con una ralentización del aumento de tamaño; después, la expansión celular del mesocarpo impulsa el crecimiento final. En esta fase III, la superficie vuelve a extenderse rápidamente, pero la formación de su cubierta externa ya no acompaña ese ritmo (Knoche et al., 2004; Alkio et al., 2012).
Esa cubierta es la cutícula, una matriz de cutina y ceras depositada sobre la epidermis. Su formación se concentra en etapas tempranas y disminuye antes de la expansión final. Por ello, una cantidad de material que apenas aumenta debe cubrir una superficie creciente: disminuye la masa de cutícula por unidad de área y se acumula deformación. Conviene distinguir ambos fenómenos: el primero describe cuánto material recubre la superficie; el segundo, cuánto se ha deformado respecto a su estado relajado (Knoche et al., 2004).
La disminución de la deposición tiene una dimensión biológica. La expresión de genes candidatos relacionados con síntesis y transporte de componentes cuticulares acompaña su evolución durante el desarrollo. El fruto llega así a la expansión final con un programa de formación de cutícula mucho menos activo. Esta concordancia vincula regulación génica y construcción de la barrera, aunque la expresión conjunta, por sí sola, no demuestra qué gen determina la resistencia al rajado (Alkio et al., 2012).
La consecuencia es una superficie progresivamente predispuesta a formar microfisuras. Estas discontinuidades pueden quedar limitadas a la cutícula y pasar inadvertidas a simple vista. Un fruto comercialmente íntegro puede, por tanto, haber perdido parte de su protección frente al agua sin presentar todavía una grieta en los tejidos (Knoche y Peschel, 2006).
Mecánica de la piel
Una microfisura no equivale a la rotura de toda la piel porque esta es una estructura compuesta. Bajo la cutícula se encuentran la epidermis y las capas hipodérmicas, cuyas paredes celulares soportan gran parte de la carga mecánica. Los ensayos de tracción biaxial, que someten segmentos de piel a tracción en dos direcciones, identifican estos tejidos como su principal soporte; la contribución estructural de la cutícula es comparativamente pequeña (Brüggenwirth et al., 2014).
Esta organización conecta dos problemas: conservar la barrera al agua y mantener unidos los tejidos sometidos a tensión. Para el segundo importa tanto la resistencia de las paredes como la adhesión entre células. Las pectinas de la lámina media, situada entre paredes de células contiguas, desempeñan un papel central en esa unión. En parénquima de cereza, la degradación experimental de pectinas facilita la separación celular, mientras que los marcadores microscópicos permiten localizar componentes de esta matriz. Estos resultados respaldan su función adhesiva; no equivalen a medir resistencia varietal al rajado (Schumann et al., 2019; Culemann et al., 2026).
La cohesión depende también de la hidratación de la matriz de la pared. En ensayos con piel de cereza, una mayor expansión de la pared por hidratación se relaciona con menor resistencia a la fractura y con una separación más frecuente entre células. Además, la fractura de un segmento sometido a tracción puede atravesar paredes, mientras que el rajado inducido por inmersión discurre predominantemente entre ellas. Por eso, una piel más rígida, una pulpa más firme y una mayor resistencia al rajado no son propiedades intercambiables (Brüggenwirth y Knoche, 2017).
La expansión de la pared por hidratación y el aumento de volumen de una célula que absorbe agua son procesos distintos. En el primero aumenta el espesor de la propia pared. En segmentos epidérmicos, la pérdida de turgencia permite ese aumento; al restablecer la turgencia mediante deplasmólisis, puede revertirse. La presión celular contribuye así a limitar la expansión de la pared. Esta restricción local es compatible con la baja turgencia del fruto maduro y no implica un aumento generalizado de la presión interna como causa de fractura (Schumann y Knoche, 2020).
Mojado y transporte
Cuando llueve, el agua encuentra una barrera cuya continuidad y tensión dependen de su desarrollo previo. El mojado puede agravar la microfisuración de la cutícula sometida a deformación. Además, la exposición es desigual: el agua puede permanecer en la cavidad peduncular o formar una gota en el extremo estilar. La superficie mojada y la duración del contacto adquieren así significado fisiológico, más allá de la precipitación acumulada (Knoche y Peschel, 2006; Winkler et al., 2020).
El agua se mueve siguiendo diferencias de potencial hídrico, que expresan su estado energético. La acumulación de solutos hace más negativo su componente osmótico y favorece la entrada cuando existe una vía conductora. Sin embargo, la cereza no es un compartimento homogéneo: se ha medido un potencial osmótico más negativo en la pulpa que en las células epidérmicas. Esta heterogeneidad contribuye a explicar la distribución interna del agua, aunque la diferencia osmótica no constituye una medida directa del flujo ni de la presión (Grimm y Knoche, 2015).
Las mediciones con sondas de presión muestran una turgencia baja en células del mesocarpo de cerezas maduras. Además, los ensayos de absorción no revelan el aumento generalizado de presión que requeriría atribuir el rajado exclusivamente a una sobrepresión interna por entrada de agua. Las tensiones de la piel siguen siendo relevantes: la presión celular, el estado osmótico y la tensión mecánica son magnitudes distintas (Knoche et al., 2014; Grimm et al., 2019).
El fruto mantiene también intercambios con el árbol. Durante su desarrollo disminuye marcadamente el aporte xilemático estimado, mientras aumenta la importancia relativa del floema. Estas estimaciones proceden de cambios de diámetro y de la interrupción selectiva del transporte; no justifican declarar nulo el flujo xilemático en cualquier situación ni irrelevante el manejo hídrico. Sí obligan a diferenciar el balance vascular del fruto de la entrada localizada de agua por una superficie mojada (Brüggenwirth et al., 2016).
El mojado de una zona puede producir rajado aunque el fruto pierda agua en su conjunto por transpiración. Asimismo, la inmersión de frutos desprendidos y la lluvia simulada sobre frutos unidos al árbol producen respuestas diferentes. La absorción total no describe, por sí sola, dónde se concentra el agua ni qué tejido pierde integridad (Knoche y Peschel, 2006; Winkler et al., 2020).
Fallo local y propagación
Para explicar ese daño hay que descender desde el fruto hasta las células situadas bajo una discontinuidad. La resonancia magnética con agua marcada ha localizado su entrada en regiones microfisuradas. La tomografía de coherencia óptica ha seguido, sin seccionar el fruto, el aumento de volumen de células del mesocarpo externo próximas al lugar donde se desarrolla una grieta. Los cambios son mucho menores en zonas alejadas. Son observaciones obtenidas en frutos desprendidos e incubados en agua, pero aportan evidencia directa de la localización del proceso (Grimm et al., 2019).
En esas observaciones, la expansión celular precede a la detección de la grieta y se intensifica durante su desarrollo; la pérdida posterior de volumen es compatible con rotura y vaciado celular. La resolución del experimento limita la precisión de la secuencia temporal. El daño en unas pocas células puede alterar el entorno inmediato y favorecer la extensión del daño en una piel previamente tensionada (Grimm et al., 2019).
Al perderse la compartimentación celular, el contenido de las células entra en contacto con paredes y membranas vecinas. Los ensayos con zumo y soluciones de ácido málico muestran que ese contacto puede favorecer el rajado y la pérdida de integridad de las membranas; buena parte del efecto depende de la acidez. Esto respalda un mecanismo de amplificación local, aunque todavía no cuantifica la concentración y el momento de liberación del ácido en una grieta que avanza bajo lluvia natural (Winkler et al., 2015).
La microscopia del frente de grieta muestra discontinuidades cuticulares, muerte celular, expansión de las paredes por hidratación y separación entre células junto al tejido íntegro (figura 1). La grieta puede avanzar por la lámina media y profundizar en la pulpa. El denominado modelo de cremallera integra estos procesos: una lesión localizada reduce la cohesión y facilita que el daño se propague. Sus componentes tienen respaldo experimental; la contribución de cada uno puede variar con el tejido y las condiciones de exposición (Schumann et al., 2019).
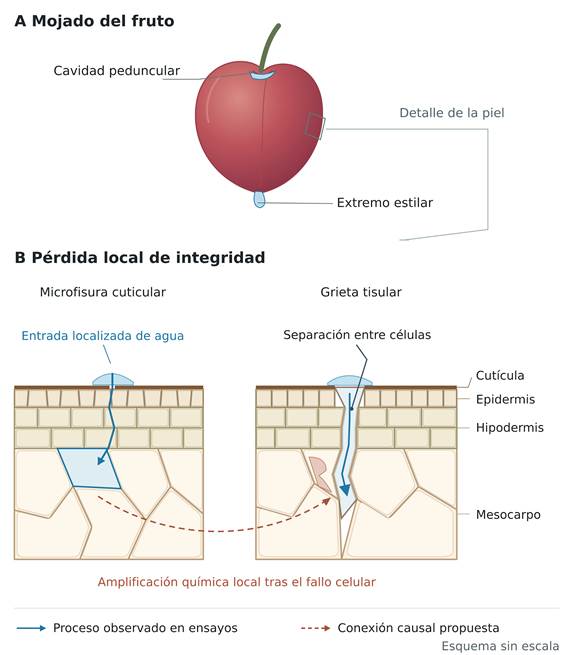
Figura 1. Dos escalas del rajado inducido por mojado. A: zonas donde puede persistir agua, sin identificar un lugar exclusivo de iniciación. B: una microfisura limitada a la cutícula y una grieta que alcanza tejidos subyacentes son estados esquemáticos distintos. La célula azul destaca el mesocarpo externo próximo a la entrada de agua. Los contornos interiores y los márgenes de pared se distinguen de forma esquemática; el área rojiza junto a la grieta representa daño celular local, sin fijar su momento exacto. Las flechas azules representan entrada localizada de agua y progresión hacia el interior observadas en ensayos; no especifican una ruta microscópica única ni un flujo cuantitativo. La flecha discontinua representa la contribución propuesta de la liberación de contenido celular al debilitamiento del entorno. El dibujo no fija una cronología universal entre rotura celular y apertura visible, ni representa presiones. Anatomía y espesores simplificados, sin escala. Elaboración original a partir de Knoche y Peschel (2006), Brüggenwirth et al. (2014), Grimm et al. (2019), Schumann et al. (2019, 2020, 2022), Schumann y Knoche (2020) y Winkler et al. (2015, 2024).
El calcio ayuda a interpretar la importancia de esa cohesión. Puede enlazar cadenas pécticas a través de sus grupos carboxilo disponibles; por ello, importan tanto la estructura de la pectina como el medio que la rodea. En segmentos y paredes extraídas de cereza, la adición de calcio reduce la expansión de la pared por hidratación, mientras que su retirada mediante un agente quelante la favorece. El pH modifica la respuesta. Estos ensayos respaldan una relación entre el entorno químico y la estabilidad de la pared, sin demostrar por sí solos toda la secuencia química de una grieta en campo (Schumann et al., 2022).
En experimentos de contacto directo con tejidos y grietas, el calcio también reduce la velocidad de extensión del rajado. Sin embargo, aumentar el calcio total del fruto mediante pulverizaciones no produjo siempre una protección equivalente. La diferencia señala que su localización y disponibilidad en el lugar del daño importan; la eficacia agronómica de una aplicación exige una evaluación propia (Winkler et al., 2024).
Susceptibilidad varietal
Esta secuencia puede comenzar y progresar con distinta facilidad según el genotipo. Su base heredable está respaldada por regiones genómicas asociadas al rajado, identificadas tanto en poblaciones observadas durante varios años bajo lluvia natural como en progenies evaluadas mediante inmersión. Ambos enfoques aportan información complementaria, pero miden exposiciones distintas. Un QTL delimita una región asociada al carácter; no identifica automáticamente un gen causal ni una tolerancia independiente del ambiente (Quero-García et al., 2021; Crump et al., 2022).
La cuestión fisiológica es cómo esa variación heredable se expresa en la barrera y en los tejidos. En una progenie se han relacionado características cuticulares, microfisuración y estado cálcico con la susceptibilidad. Estos resultados conectan diferencias entre genotipos con procesos concretos, aunque proceden de una población y no establecen un indicador universal de resistencia. La susceptibilidad resulta de la combinación de propiedades, más que de un único espesor cuticular o valor de firmeza (Knoche et al., 2025).
Empieza a existir también evidencia funcional acotada. La sobreexpresión transitoria de PavCML42, candidato relacionado con señalización de calcio, aumentó el rajado asociado al punto de infiltración en cerezas desprendidas y modificó actividades enzimáticas de pared. El resultado ayuda a conectar señalización y desorganización tisular, pero la herida de inoculación y el sistema experimental limitan su extrapolación a frutos intactos bajo lluvia. Aún no constituye una explicación general de las diferencias varietales (Yang et al., 2026).
Maduración y expresión del daño
Al aproximarse la cosecha, el crecimiento del fruto y la transformación de sus paredes celulares convergen. La expansión del tejido modifica la proporción de materiales estructurales. En el seguimiento de ‘Regina’, la masa total de pared por fruto aumentó, pero lo hizo más despacio que la masa fresca; la cantidad de celulosa por fruto permaneció aproximadamente constante y su proporción en la pared disminuyó. Por tanto, una reducción de material de pared por unidad de masa fresca no implica necesariamente una disminución de su cantidad absoluta por fruto: también puede reflejar diferencias entre las velocidades de deposición y de crecimiento (Schumann et al., 2020).
A la vez cambia la composición de la matriz. En ese mismo seguimiento aumentó la fracción de pectinas solubles en agua y cambió la distribución de otras fracciones pécticas. La pared conserva así su presencia física mientras modifica la organización de los componentes que contribuyen a su cohesión e hidratación. Las fracciones se definen por los disolventes que permiten extraerlas: sus cantidades no miden directamente la fuerza de unión entre células. Para interpretar el rajado es necesario relacionar esa química con la respuesta del tejido, sin atribuir a un aumento de pectina soluble un incremento directo del rajado (Schumann et al., 2020; Culemann et al., 2026).
La comparación de muestras a lo largo del desarrollo permite relacionar estos cambios químicos con las propiedades físicas de la pared. El aumento de espesor de las paredes epidérmicas después de eliminar la turgencia fue mayor en estados más avanzados. Sin embargo, la capacidad de expansión por hidratación de las paredes extraídas no siguió exactamente la misma evolución: tendió a estabilizarse durante la fase III. Una pared extraída pierde parte de las interacciones y restricciones que conserva dentro del tejido. Estos resultados muestran cambios en su respuesta potencial durante la maduración, sin demostrar que las paredes presenten ya esa expansión antes de la lluvia (Schumann et al., 2020).
La regulación hormonal del desarrollo también puede modificar la vulnerabilidad estructural del fruto. En un ensayo con ‘Summit’, la aplicación de ácido abscísico (ABA) antes del cambio de color aumentó el rajado y se acompañó de cambios anatómicos y de expresión de genes relacionados con la pared. La intervención aporta evidencia de un efecto hormonal bajo esas condiciones, aunque no permite separar por completo ese efecto de posibles diferencias en el avance de la maduración. Los cambios de expresión identifican procesos asociados a la respuesta; la función causal de cada gen y el alcance del efecto del ABA en otras condiciones permanecen por determinar (Liu et al., 2026).
Para interpretar el huerto, conviene reconstruir esa secuencia: qué estado tenía el fruto antes del episodio de mojado, dónde permaneció el agua y cómo pudo iniciarse y extenderse el daño. El color, el calibre o la firmeza informan sobre aspectos de la maduración, pero no revelan por sí solos la continuidad microscópica de la barrera ni la capacidad de conservar la adhesión. Una cereza sin grietas visibles todavía puede contener microfisuras; un mismo volumen de lluvia puede encontrar superficies y tejidos en condiciones diferentes. El riesgo expresa el encuentro entre susceptibilidad y exposición.
Esta base fisiológica permite situar las decisiones que abordará la siguiente entrada: el manejo puede modificar el desarrollo del fruto, su estado hídrico y el ambiente de la copa. Para valorar cada intervención habrá que precisar sobre cuál de esos procesos actúa y qué evidencia demuestra que el cambio reduce efectivamente el rajado.
Bibliografía
Alkio, M., Jonas, U., Sprink, T., van Nocker, S., Knoche, M. (2012). Identification of putative candidate genes involved in cuticle formation in Prunus avium (sweet cherry) fruit. Annals of Botany, 110(1), 101–112. https://doi.org/10.1093/aob/mcs087
Brüggenwirth, M., Fricke, H., Knoche, M. (2014). Biaxial tensile tests identify epidermis and hypodermis as the main structural elements of sweet cherry skin. AoB PLANTS, 6, plu019. https://doi.org/10.1093/aobpla/plu019
Brüggenwirth, M., Winkler, A., Knoche, M. (2016). Xylem, phloem, and transpiration flows in developing sweet cherry fruit. Trees, 30, 1821–1830. https://doi.org/10.1007/s00468-016-1415-4
Brüggenwirth, M., Knoche, M. (2017). Cell wall swelling, fracture mode, and the mechanical properties of cherry fruit skins are closely related. Planta, 245, 765–777. https://doi.org/10.1007/s00425-016-2639-7
Crump, W. W., Peace, C., Zhang, Z., McCord, P. (2022). Detection of Breeding-Relevant Fruit Cracking and Fruit Firmness Quantitative Trait Loci in Sweet Cherry via Pedigree-Based and Genome-Wide Association Approaches. Frontiers in Plant Science, 13, 823250. https://doi.org/10.3389/fpls.2022.823250
Culemann, E., Schumann, C., Winkler, A., Sitzenstock, S., Knoche, M. (2026). Cell:cell adhesion in sweet cherry fruit primarily due to pectins. Frontiers in Plant Science, 16, 1690728. https://doi.org/10.3389/fpls.2025.1690728
Grimm, E., Knoche, M. (2015). Sweet cherry skin has a less negative osmotic potential than the flesh. Journal of the American Society for Horticultural Science, 140(5), 472–479. https://doi.org/10.21273/JASHS.140.5.472
Grimm, E., Hahn, J., Pflugfelder, D., Schmidt, M. J., van Dusschoten, D., Knoche, M. (2019). Localized bursting of mesocarp cells triggers catastrophic fruit cracking. Horticulture Research, 6, 79. https://doi.org/10.1038/s41438-019-0161-3
Knoche, M., Beyer, M., Peschel, S., Oparlakov, B., Bukovac, M. J. (2004). Changes in strain and deposition of cuticle in developing sweet cherry fruit. Physiologia Plantarum, 120(4), 667–677. https://doi.org/10.1111/j.0031-9317.2004.0285.x
Knoche, M., Peschel, S. (2006). Water on the Surface Aggravates Microscopic Cracking of the Sweet Cherry Fruit Cuticle. Journal of the American Society for Horticultural Science, 131(2), 192–200. https://doi.org/10.21273/JASHS.131.2.192
Knoche, M., Grimm, E., Schlegel, H. J. (2014). Mature sweet cherries have low turgor. Journal of the American Society for Horticultural Science, 139(1), 3–12. https://doi.org/10.21273/JASHS.139.1.3
Knoche, M., Grosset-Grange, L., Quero-García, J., Alletru, D., Boutaleb, L. (2025). Cracking susceptibility of full-sibs of a cross of a cracking tolerant and cracking susceptible sweet cherry: Relation to cuticle characteristics, microcracking and calcium. PLOS ONE, 20(1), e0316637. https://doi.org/10.1371/journal.pone.0316637
Liu, R., Wang, L., Sun, Z., Yan, Z., An, X., Sun, W., Nong, H., Usman, M., Qin, Z., Jiu, S., Chen, L., Wu, Y., Zhang, C. (2026). Abscisic acid promotes sweet cherry fruit cracking dependent on cell wall disassembly. Food Research International, 237, 119391. https://doi.org/10.1016/j.foodres.2026.119391
Quero-García, J., Letourmy, P., Campoy, J. A., Branchereau, C., Malchev, S., Barreneche, T., Dirlewanger, E. (2021). Multi-year analyses on three populations reveal the first stable QTLs for tolerance to rain-induced fruit cracking in sweet cherry (Prunus avium L.). Horticulture Research, 8, 136. https://doi.org/10.1038/s41438-021-00571-6
Schumann, C., Winkler, A., Brüggenwirth, M., Köpcke, K., Knoche, M. (2019). Crack initiation and propagation in sweet cherry skin: A simple chain reaction causes the crack to ‘run’. PLOS ONE, 14(7), e0219794. https://doi.org/10.1371/journal.pone.0219794
Schumann, C., Knoche, M. (2020). Swelling of cell walls in mature sweet cherry fruit: factors and mechanisms. Planta, 251, 65. https://doi.org/10.1007/s00425-020-03352-y
Schumann, C., Sitzenstock, S., Erz, L., Knoche, M. (2020). Decreased deposition and increased swelling of cell walls contribute to increased cracking susceptibility of developing sweet cherry fruit. Planta, 252, 96. https://doi.org/10.1007/s00425-020-03494-z
Schumann, C., Winkler, A., Knoche, M. (2022). Calcium decreases cell wall swelling in sweet cherry fruit. Scientific Reports, 12, 16496. https://doi.org/10.1038/s41598-022-20266-9
Winkler, A., Ossenbrink, M., Knoche, M. (2015). Malic Acid Promotes Cracking of Sweet Cherry Fruit. Journal of the American Society for Horticultural Science, 140(3), 280–287. https://doi.org/10.21273/JASHS.140.3.280
Winkler, A., Blumenberg, I., Schürmann, L., Knoche, M. (2020). Rain cracking in sweet cherries is caused by surface wetness, not by water uptake. Scientia Horticulturae, 269, 109400. https://doi.org/10.1016/j.scienta.2020.109400
Winkler, A., Bunger, P., Morales Lang, P., Schumann, C., Brüggenwirth, M., Knoche, M. (2024). Mode of Action of Calcium in Reducing Macrocracking of Sweet Cherry Fruit. Journal of the American Society for Horticultural Science, 149(2), 61–74. https://doi.org/10.21273/JASHS05354-23
Yang, H., Hou, S., Jiang, S., Wei, G., Wu, J., Zhu, S., Sitarek, M., Fu, Q. (2026). Regulatory effects of exogenous calcium on sweet cherry fruit cracking and functional analysis of the PavCML42 gene. Frontiers in Plant Science, 17, 1916674. https://doi.org/10.3389/fpls.2026.1916674